Welcome to Cherry Times


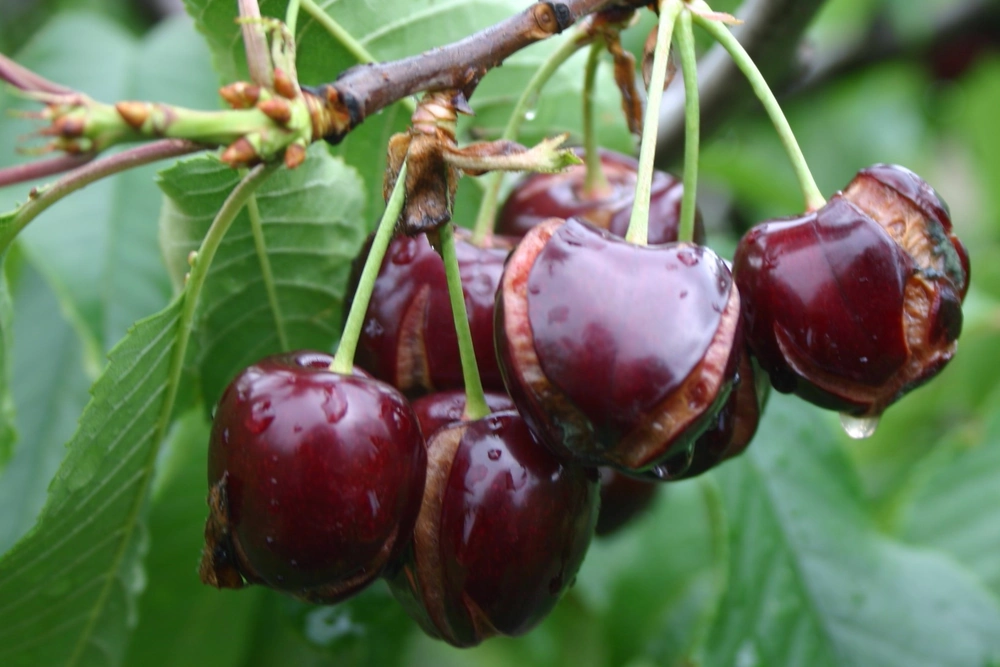 Fonte immagine: Stefano Lugli
La pioggia mette in luce una vulnerabilità che la ciliegia sviluppa nel corso della maturazione. Per comprendere lo spacco, occorre seguire la crescita del frutto, le trasformazioni della buccia e ciò che accade quando l’acqua raggiunge una zona indebolita. Le conoscenze attuali collocano l’inizio del danno a livello locale e collegano la sua propagazione alla perdita di coesione dei tessuti. Questa prospettiva aiuta a spiegare perché frutti apparentemente simili reagiscano in modo diverso alla stessa esposizione all’acqua.
La ciliegia deve aumentare la propria superficie mentre cresce il volume della polpa. La sua crescita segue una curva a doppia sigmoide: dopo una prima fase di crescita attiva, l’indurimento del nocciolo coincide con un rallentamento dell’aumento di dimensioni; in seguito, l’espansione cellulare del mesocarpo sostiene la crescita finale. In questa fase III, la superficie torna a estendersi rapidamente, ma la formazione del rivestimento esterno non riesce più a tenere lo stesso ritmo (Knoche et al., 2004; Alkio et al., 2012).
Questo rivestimento è la cuticola, una matrice di cutina e cere depositata sull’epidermide. La sua formazione si concentra nelle fasi iniziali e diminuisce prima dell’espansione finale. Di conseguenza, una quantità di materiale che aumenta appena deve ricoprire una superficie sempre più ampia: la massa di cuticola per unità di superficie diminuisce e si accumula deformazione.
Deposito
Quantità di materiale cuticolare che riveste la superficie del frutto.
Deformazione
Quanto la superficie si è estesa rispetto al suo stato rilassato.
I due fenomeni descrivono aspetti distinti della cuticola (Knoche et al., 2004).
La riduzione del deposito ha anche una dimensione biologica. L’espressione di geni candidati coinvolti nella sintesi e nel trasporto dei componenti cuticolari segue l’evoluzione della cuticola durante lo sviluppo. Il frutto arriva così all’espansione finale con un programma di formazione della cuticola molto meno attivo. Questa corrispondenza collega la regolazione genica alla costruzione della barriera, ma la sola espressione coordinata non dimostra quale gene determini la resistenza allo spacco (Alkio et al., 2012).
La conseguenza è una superficie sempre più predisposta alla formazione di microfessure. Queste discontinuità possono restare confinate alla cuticola e non essere visibili a occhio nudo. Un frutto integro dal punto di vista commerciale può quindi aver già perso parte della propria protezione dall’acqua, senza presentare ancora una spaccatura nei tessuti (Knoche e Peschel, 2006).
Una microfessura non equivale alla rottura dell’intera buccia, perché questa è una struttura composta. Sotto la cuticola si trovano l’epidermide e gli strati ipodermici, le cui pareti cellulari sostengono gran parte del carico meccanico. Le prove di trazione biassiale, che sottopongono segmenti di buccia a trazione in due direzioni, indicano che questi tessuti costituiscono il principale sostegno strutturale; il contributo della cuticola è relativamente ridotto (Brüggenwirth et al., 2014).
Questa organizzazione collega due problemi: mantenere la barriera all’acqua e tenere uniti i tessuti sottoposti a tensione. Per il secondo contano sia la resistenza delle pareti sia l’adesione tra le cellule. Le pectine della lamella mediana, situata tra le pareti di cellule contigue, svolgono un ruolo centrale in questa adesione.
Nel parenchima della ciliegia, la degradazione sperimentale delle pectine facilita la separazione cellulare, mentre marcatori microscopici permettono di localizzare i componenti di questa matrice. I risultati ne confermano la funzione adesiva, ma non equivalgono a una misurazione della resistenza allo spacco delle diverse varietà (Schumann et al., 2019; Culemann et al., 2026).
La coesione dipende anche dall’idratazione della matrice della parete. Nelle prove condotte sulla buccia di ciliegia, una maggiore espansione della parete dovuta all’idratazione è associata a una minore resistenza alla frattura e a una separazione cellulare più frequente. Inoltre, la frattura di un segmento sottoposto a trazione può attraversare le pareti, mentre lo spacco indotto per immersione procede prevalentemente tra una cellula e l’altra.
Perciò, una buccia più rigida, una polpa più soda e una maggiore resistenza allo spacco non sono proprietà intercambiabili (Brüggenwirth e Knoche, 2017).
L’espansione della parete dovuta all’idratazione e l’aumento di volume di una cellula che assorbe acqua sono processi distinti. Nel primo aumenta lo spessore della parete stessa. Nei segmenti epidermici, la perdita di turgore consente questo aumento; ripristinando il turgore mediante deplasmolisi, il fenomeno può essere invertito. La pressione cellulare contribuisce quindi a limitare l’espansione della parete.
Questo vincolo locale è compatibile con il basso turgore del frutto maturo e non implica un aumento generalizzato della pressione interna come causa della frattura (Schumann e Knoche, 2020).
Quando piove, l’acqua incontra una barriera la cui continuità e tensione dipendono dallo sviluppo precedente del frutto. La bagnatura può aggravare la microfessurazione della cuticola sottoposta a deformazione. Inoltre, l’esposizione non è uniforme: l’acqua può ristagnare nella cavità peduncolare o formare una goccia all’estremità stilare. Assumono così rilevanza fisiologica la superficie bagnata e la durata del contatto, oltre alla quantità totale di pioggia (Knoche e Peschel, 2006; Winkler et al., 2020).
L’acqua si muove seguendo differenze di potenziale idrico, che ne esprimono lo stato energetico. L’accumulo di soluti rende più negativo il potenziale osmotico e favorisce l’ingresso dell’acqua quando è disponibile una via di trasporto. La ciliegia, però, non è un compartimento omogeneo: è stato misurato un potenziale osmotico più negativo nella polpa che nelle cellule epidermiche.
Questa eterogeneità aiuta a spiegare la distribuzione interna dell’acqua, ma la differenza osmotica non misura direttamente né il flusso né la pressione (Grimm e Knoche, 2015).
Le misurazioni con sonde di pressione mostrano un basso turgore nelle cellule del mesocarpo delle ciliegie mature. Inoltre, le prove di assorbimento non rilevano l’aumento generalizzato di pressione necessario per attribuire lo spacco esclusivamente a una sovrapressione interna causata dall’ingresso d’acqua. Le tensioni della buccia restano rilevanti: pressione cellulare, stato osmotico e tensione meccanica sono grandezze diverse (Knoche et al., 2014; Grimm et al., 2019).
Il frutto mantiene inoltre scambi con l’albero. Nel corso dello sviluppo, l’apporto xilematico stimato diminuisce nettamente, mentre aumenta l’importanza relativa del floema. Queste stime derivano dalle variazioni di diametro e dall’interruzione selettiva del trasporto; non giustificano l’affermazione che il flusso xilematico sia sempre nullo o che la gestione idrica sia irrilevante.
Impongono invece di distinguere il bilancio vascolare del frutto dall’ingresso localizzato dell’acqua attraverso una superficie bagnata (Brüggenwirth et al., 2016).
La bagnatura di una zona può provocare lo spacco anche quando, nel complesso, il frutto perde acqua per traspirazione. Analogamente, l’immersione di frutti raccolti e la pioggia simulata su frutti ancora attaccati all’albero producono risposte diverse. La quantità totale d’acqua assorbita, da sola, non descrive dove si concentra l’acqua né quale tessuto perda integrità (Knoche e Peschel, 2006; Winkler et al., 2020).
Per spiegare il danno occorre scendere dal frutto alle cellule situate sotto una discontinuità. La risonanza magnetica con acqua marcata ha localizzato il suo ingresso nelle regioni microfessurate. La tomografia a coerenza ottica ha seguito, senza sezionare il frutto, l’aumento di volume delle cellule del mesocarpo esterno vicine al punto in cui si sviluppa una fessura. I cambiamenti sono molto più ridotti nelle zone lontane.
Sono osservazioni ottenute su frutti raccolti e immersi nell’acqua, ma forniscono prove dirette della localizzazione del processo (Grimm et al., 2019).
In queste osservazioni, l’espansione cellulare precede il rilevamento della fessura e si intensifica durante il suo sviluppo; la successiva perdita di volume è compatibile con la rottura e lo svuotamento delle cellule. La risoluzione dell’esperimento limita la precisione della sequenza temporale. Il danno a poche cellule può alterare l’ambiente immediatamente circostante e favorire l’estensione del danno in una buccia già sottoposta a tensione (Grimm et al., 2019).
Quando si perde la compartimentazione cellulare, il contenuto delle cellule entra in contatto con le pareti e le membrane vicine. Le prove condotte con succo e soluzioni di acido malico mostrano che questo contatto può favorire lo spacco e la perdita d’integrità delle membrane; gran parte dell’effetto dipende dall’acidità.
I risultati supportano un meccanismo di amplificazione locale, ma non quantificano ancora la concentrazione e il momento di rilascio dell’acido in una fessura che avanza durante una pioggia naturale (Winkler et al., 2015).
La microscopia del fronte della fessura mostra discontinuità della cuticola, morte cellulare, espansione delle pareti per idratazione e separazione tra cellule accanto al tessuto integro (figura 1). La fessura può avanzare lungo la lamella mediana e approfondirsi nella polpa. Il cosiddetto modello “a cerniera” riunisce questi processi: una lesione localizzata riduce la coesione e facilita la propagazione del danno.
Le sue componenti sono supportate da prove sperimentali; il contributo di ciascuna può variare a seconda del tessuto e delle condizioni di esposizione (Schumann et al., 2019).
Schema editoriale dei processi descritti nel testo; non rappresenta una sequenza temporale universale né quantifica i flussi o le pressioni.
Figura 1. Due scale dello spacco indotto dalla bagnatura. A: zone in cui l’acqua può ristagnare, senza indicare un unico punto di inizio. B: una microfessura limitata alla cuticola e una fessura che raggiunge i tessuti sottostanti rappresentano stadi schematici distinti. La cellula blu evidenzia il mesocarpo esterno vicino al punto d’ingresso dell’acqua.
I contorni interni e i margini delle pareti sono rappresentati schematicamente; l’area rossastra accanto alla fessura indica un danno cellulare locale, senza stabilirne il momento esatto. Le frecce blu rappresentano l’ingresso localizzato dell’acqua e la sua progressione verso l’interno osservati nelle prove; non indicano un unico percorso microscopico né quantificano il flusso. La freccia tratteggiata rappresenta il contributo ipotizzato del rilascio del contenuto cellulare all’indebolimento dell’area circostante.
Il disegno non stabilisce una sequenza temporale universale tra la rottura cellulare e l’apertura visibile, né rappresenta pressioni. Anatomia e spessori sono semplificati e non sono in scala. Elaborazione originale basata su Knoche e Peschel (2006), Brüggenwirth et al. (2014), Grimm et al. (2019), Schumann et al. (2019, 2020, 2022), Schumann e Knoche (2020) e Winkler et al. (2015, 2024).
Il calcio aiuta a comprendere l’importanza della coesione. Può legare tra loro le catene pectiche attraverso i gruppi carbossilici disponibili; contano quindi sia la struttura della pectina sia l’ambiente circostante. In segmenti e pareti estratte dalla ciliegia, l’aggiunta di calcio riduce l’espansione della parete dovuta all’idratazione, mentre la sua rimozione tramite un agente chelante la favorisce. Anche il pH modifica la risposta.
Queste prove confermano una relazione tra l’ambiente chimico e la stabilità della parete, senza dimostrare da sole l’intera sequenza chimica che si verifica in una fessura in campo (Schumann et al., 2022).
Negli esperimenti di contatto diretto con i tessuti e con le fessure, il calcio riduce anche la velocità di propagazione dello spacco. Tuttavia, l’aumento del calcio totale nel frutto tramite irrorazioni non ha sempre prodotto una protezione equivalente. Questa differenza indica che contano la localizzazione e la disponibilità del calcio nel punto del danno; l’efficacia agronomica di un trattamento deve essere valutata separatamente (Winkler et al., 2024).
Questa sequenza può iniziare e progredire con diversa facilità a seconda del genotipo. La sua componente ereditaria è supportata da regioni genomiche associate allo spacco, individuate sia in popolazioni osservate per più anni sotto la pioggia naturale sia in progenie valutate mediante immersione. I due approcci offrono informazioni complementari, ma misurano condizioni di esposizione diverse.
Un QTL delimita una regione associata al carattere; non identifica automaticamente un gene causale né una tolleranza indipendente dall’ambiente (Quero-García et al., 2021; Crump et al., 2022).
La questione fisiologica è capire come questa variabilità ereditaria si manifesti nella barriera e nei tessuti. In una progenie, alcune caratteristiche della cuticola, la microfessurazione e lo stato del calcio sono state messe in relazione con la suscettibilità. Questi risultati collegano le differenze tra genotipi a processi specifici, ma derivano da una sola popolazione e non definiscono un indicatore universale di resistenza.
La suscettibilità dipende dalla combinazione di più proprietà, non da un singolo valore di spessore della cuticola o di consistenza (Knoche et al., 2025).
Cominciano a emergere anche prove funzionali circoscritte. La sovraespressione transitoria di PavCML42, gene candidato collegato alla segnalazione del calcio, ha aumentato lo spacco associato al punto d’infiltrazione nelle ciliegie raccolte e ha modificato l’attività degli enzimi della parete. Il risultato aiuta a collegare la segnalazione alla disorganizzazione dei tessuti, ma la ferita d’inoculazione e il sistema sperimentale limitano la possibilità di estenderlo ai frutti integri esposti alla pioggia.
Non costituisce ancora una spiegazione generale delle differenze varietali (Yang et al., 2026).
Con l’avvicinarsi della raccolta, la crescita del frutto e la trasformazione delle pareti cellulari procedono insieme. L’espansione dei tessuti modifica la proporzione dei materiali strutturali. Nel monitoraggio della varietà ‘Regina’, la massa totale della parete per frutto è aumentata, ma più lentamente della massa fresca; la quantità di cellulosa per frutto è rimasta pressoché costante, mentre la sua proporzione nella parete è diminuita.
Di conseguenza, una riduzione del materiale della parete per unità di massa fresca non implica necessariamente che la sua quantità assoluta per frutto sia diminuita: può riflettere anche la diversa velocità di deposizione e crescita (Schumann et al., 2020).
Nel contempo, cambia la composizione della matrice. Nello stesso monitoraggio è aumentata la frazione di pectine solubili in acqua ed è cambiata la distribuzione di altre frazioni pectiche. La parete conserva quindi la propria presenza fisica, modificando però l’organizzazione dei componenti che contribuiscono alla coesione e all’idratazione. Le frazioni sono definite in base ai solventi che ne consentono l’estrazione: le loro quantità non misurano direttamente la forza di adesione tra le cellule.
Per interpretare lo spacco è necessario collegare questi cambiamenti chimici alla risposta del tessuto, senza attribuire a un aumento delle pectine solubili un incremento diretto dello spacco (Schumann et al., 2020; Culemann et al., 2026).
Confrontare campioni raccolti in diverse fasi dello sviluppo permette di mettere in relazione i cambiamenti chimici con le proprietà fisiche della parete. L’aumento dello spessore delle pareti epidermiche dopo la rimozione del turgore è stato maggiore nelle fasi più avanzate. Tuttavia, la capacità di espansione per idratazione delle pareti estratte non ha seguito esattamente la stessa evoluzione: nella fase III ha teso a stabilizzarsi.
Una parete estratta perde parte delle interazioni e dei vincoli che conserva all’interno del tessuto. Questi risultati mostrano come cambi la sua risposta potenziale durante la maturazione, ma non dimostrano che le pareti presentino già tale espansione prima della pioggia (Schumann et al., 2020).
Anche la regolazione ormonale dello sviluppo può modificare la vulnerabilità strutturale del frutto. In una prova sulla varietà ‘Summit’, l’applicazione di acido abscissico (ABA) prima del viraggio di colore ha aumentato lo spacco ed è stata accompagnata da cambiamenti anatomici e nell’espressione di geni legati alla parete. L’intervento fornisce prove di un effetto ormonale in quelle condizioni, ma non permette di separare del tutto tale effetto da eventuali differenze nello stadio di maturazione.
I cambiamenti nell’espressione genica individuano processi associati alla risposta; la funzione causale di ciascun gene e la portata dell’effetto dell’ABA in altre condizioni restano da determinare (Liu et al., 2026).
Per interpretare ciò che accade in frutteto, conviene ricostruire questa sequenza: in quale stato si trovava il frutto prima della bagnatura, dove è rimasta l’acqua e in che modo il danno può essere iniziato e propagato. Colore, calibro e consistenza forniscono indicazioni su alcuni aspetti della maturazione, ma da soli non rivelano la continuità microscopica della barriera né la capacità di mantenere l’adesione tra i tessuti.
Una ciliegia senza spaccature visibili può contenere microfessure; lo stesso volume di pioggia può incontrare superfici e tessuti in condizioni diverse. Il rischio nasce dall’incontro tra suscettibilità ed esposizione.
Queste basi fisiologiche permettono di inquadrare le decisioni che saranno trattate nel prossimo articolo: la gestione può modificare lo sviluppo del frutto, il suo stato idrico e l’ambiente della chioma. Per valutare ogni intervento bisognerà precisare su quale processo agisce e quali prove dimostrano che il cambiamento riduce davvero lo spacco.
I titoli degli studi sono mantenuti nella lingua originale.